 产学研创新服务平台(全国)


一种提升饲草植物耐铝性的基因及其用途发明专利
更新时间:2026-10-01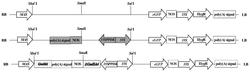 专利申请类型:发明专利;
地区:四川-广安;
源自:广安高价值专利检索信息库;
专利名称:一种提升饲草植物耐铝性的基因及其用途
专利类型:发明专利
专利申请号:CN202311543274.0
专利申请(专利权)人:广安市饲料工业管理站
权利人地址:四川省广安市广安区万盛东路25号
专利发明(设计)人:林涛,蒋曹德,刘卢生,玉永雄
专利摘要:本发明公开了一种提升饲草植物耐铝性的基因及其用途,属于基因工程技术领域。该基因包括如SEQ ID NO.1、SEQ ID NO.2和SEQ ID NO.3所示的至少一种基因。本发明构建的双基因和三基因组合转基因紫花苜蓿的耐铝性和柠檬酸分泌量显著增强,可见,利用“柠檬酸合成与分泌代谢通路”分子设计创制的双基因和三基因组合紫花苜蓿具有可行性且意义重大,有望在不改变牧草品质的基础上提高酸性条件下紫花苜蓿的产量,促进我国南方畜牧业的发展。
主权利要求:
1.一种包含M811启动子、GmM4、ΔGmHA4和MsCSX1基因的载体在提升紫花苜蓿耐铝性中的用途,其特征在于,所述GmM4基因的核苷酸序列如SEQIDNO.1所示;
所述MsCSX1基因的核苷酸序列如SEQIDNO.3所示;
所述ΔGmHA4基因为表达出不带有C末端自抑区的GmHA4基因改造而成,所述GmHA4基因的核苷酸序列如SEQIDNO.2所示;
所述M811启动子的核苷酸序列如SEQIDNO.4所示。 说明书 : 一种提升饲草植物耐铝性的基因及其用途技术领域[0001] 本发明属于基因工程技术领域,具体涉及一种提升饲草植物耐铝性的基因及其用途。背景技术[0002] 紫花苜蓿是优质豆科牧草,被誉为“牧草之王”,在全世界广泛种植(Liuetal.,2016)。我国南方草食畜牧业发展迅速,对优质豆科牧草的需求剧增,发展南方紫花苜蓿产业前景广阔(曹宏等,2011)。铝被认为是酸性土壤中限制紫花苜蓿种植和丰收的主要因素。且我国南方土壤多为酸性,而土壤中游离出来的铝离子(Al3+为主)成为限制优质豆科牧草南移栽培的关键因素(吴道铭等,2013)。传统的解决方法是向土壤中施加石灰和有机肥,但传统石灰改土措施很难消除深层酸性土壤对紫花苜蓿生长的抑制作用,且存在成本高、时效短、缺乏可行性等问题(Sadeetal.,2016)。此外,紫花苜蓿包括苜蓿属其它种均缺乏耐铝种质,采用常规育种难以获得耐铝品种(魏运民等,2020)。因此,改善紫花苜蓿的耐铝性尤为重要。发明内容[0003] 针对现有技术中的上述不足,本发明提供一种提升饲草植物耐铝性的基因,。[0004] 为实现上述目的,本发明解决其技术问题所采用的技术方案是:[0005] 一种提升饲草植物耐铝性的基因,该基因包括如SEQIDNO.1、SEQIDNO.2和SEQIDNO.3所示的至少一种基因。[0006] 进一步地,基因由SEQIDNO.1、SEQIDNO.2和SEQIDNO.3三种基因组成。[0007] 进一步地,基因由SEQIDNO.1和SEQIDNO.2两种基因组成。[0008] 上述基因在筛选耐铝性饲草植物或饲草植物种质资源改良中的应用。[0009] 进一步地,饲草植物为紫花苜蓿。[0010] 本发明的有益效果:[0011] 本发明构建的双基因和三基因组合转基因紫花苜蓿的耐铝性和柠檬酸分泌量显著增强,可见,利用“柠檬酸合成与分泌代谢通路”分子设计创制的双基因和三基因组合紫花苜蓿具有可行性且意义重大,有望在不改变牧草品质的基础上提高酸性条件下紫花苜蓿的产量,促进我国南方畜牧业的发展。附图说明[0012] 图1为pSuper1300‑GmM4‑ΔGmHA4‑eGFP的双基因组合载体T‑DNA区结构示意图;[0013] 图2为pSuper1300‑GmM4‑ΔGmHA4‑MsCSX1‑eGFP三基因组合载体的T‑DNA区结构示意图;[0014] 图3为双基因组合35S::(GmM4‑ΔGmHA4)转基因烟草中GmM4、ΔGmHA4的表达水平;[0015] 图4为35S::(GmM4‑ΔGmHA4)转基因烟草的表型及其功能分析;其中,A:根相对伸长率;B:根尖柠檬酸分泌量;C:0、50μmol/LAlCl3处理24h时烟草根尖铝含量;WT:野生型;OE:过表达型;柱形图上不同字母表示P<0.05的显著性;[0016] 图5为GmM4、mM7、GmMATE13转基因烟草的功能分析;其中,A:根相对伸长率(RRE);B:根尖柠檬酸分泌量;C:根尖铝含量;WT:野生型;OE:过表达型;柱形图上不同字母表示P<0.05的显著性;[0017] 图6为ΔGmHA4转基因烟草的功能分析;其中,A:根相对伸长率(RRE);B:根尖柠檬酸分泌量;C:根尖铝含量;柱形图上不同字母表示P<0.05的显著性;[0018] 图7为三基因组合35S::(GmM4‑ΔGmHA4‑MsCSX1)转基因烟草的基因表达水平,其中,WT:野生型;OE:过表达型;柱形图上不同字母表示P<0.05的显著性;[0019] 图8为35S::(GmM4‑ΔGmHA4‑MsCSX1)转基因烟草的功能分析;其中,A:根相对伸长率(RRE);B:根尖柠檬酸分泌量;C:根尖铝含量;WT:野生型;OE:过表达型;柱形图上不同字母表示P<0.05的显著性;[0020] 图9为GmFER84转基因烟草的功能分析,A:柠檬酸分泌量;B:根尖铝含量;C:丙二醛含量;D:根相对伸长率(RRE);WT:野生型;OE:过表达型;0、25、50μmol/LAlCl3处理24h;柱形图上不同字母表示P<0.05的显著性;[0021] 图10为M811::(GmM4‑ΔGmHA4)转基因紫花苜蓿发根的耐铝功能鉴定;其中,A:根尖柠檬酸分泌量;B:根尖可溶性蛋白含量;C:根尖铝含量;D:根尖H2O2含量;E:根尖伊文思蓝染色。F:根相对伸长率(RRE)。WT:野生型;OE:过表达型;0、25μmol/LAlCl3处理24h;柱形图上不同字母表示P<0.05的显著性;[0022] 图11为M811::(GmM4‑ΔGmHA4‑MsCSX1)转基因紫花苜蓿的耐铝功能分析;其中,A:紫花苜蓿根尖柠檬酸分泌量;B:紫花苜蓿根尖可溶性蛋白含量;C:紫花苜蓿根尖铝含量;D:紫花苜蓿根尖H2O2的含量;E:紫花苜蓿根尖伊文思蓝染色;F:根相对伸长率(RRE);WT:野生型;OE:过表达型;柱形图上不同字母表示P<0.05的显著性。具体实施方式[0023] 下面对本发明的具体实施方式进行描述,以便于本技术领域的技术人员理解本发明,但应该清楚,本发明不限于具体实施方式的范围,对本技术领域的普通技术人员来讲,只要各种变化在所附的权利要求限定和确定的本发明的精神和范围内,这些变化是显而易见的,一切利用本发明构思的发明创造均在保护之列。[0024] 实施例1目的基因的克隆与载体构建[0025] 1、克隆[0026] 于2017年9月,在0.5mmol/LCaCl2(pH4.5)条件下预处理12h后,加入50μmol/LAlCl3处理24h,提取RNA,以反转录得到的cDNA为模板,通过比对Phytozome基因库(https://phytozome.jgi.doe.gov/pz/portal.html#)和NCBI对比序列(https://blast.ncbi.nlm.nih.gov/Blast.cgi),以大豆基因组GmM4(SEQIDNO.1)、GmHA4(SEQIDNO.2)、MsCSX1(SEQIDNO.3)的全长编码序列设计特异性引物,采用高保真酶PrimerSTAR进行PCR扩增,得到全长编码序列。引物序列如下:[0027] GmM4‑35S‑F:5’‑GAGAACACGGGGGACGAGCTCATGGACGAGAATAGAAGTTCC‑3’;[0028] GmM4‑35S‑R:5’‑AATGTTTGAACGATCGTCGACTCATTTGCAGTGTCCTTGTTG‑3’;[0029] GmHA4‑35S‑F:5’‑GAGAACACGGGGGACGAGCTCATGGGCGGTATCAGCCTTGA‑3’;[0030] GmHA4‑35S‑R:5’‑AATGTTTGAACGATCGTCGACTCAACTCAGGACGTAGCGGAT‑3’;[0031] MsCSX1‑35S‑F:5’‑GAGAACACGGGGGACGAGCTCATGTCAACCGATTCACAACC‑3’;[0032] MsCSX1‑35S‑R:5’‑AATGTTTGAACGATCGTCGACCTACATCCTAGATCCAGCAAG‑3’;[0033] PCR产物经1%琼脂糖凝胶电泳检测GmFER84目的片段(其他基因参照此方法),条带大小正确后,利用OMEGA凝胶回收试剂盒回收目的片段,与pMD19‑T载体连接(16℃,8h),GmFER84转化大肠杆菌DH5α感受态细胞。[0034] 用无菌枪头挑取GmFER84单菌落,用检测引物M13F/R检测GmFER84菌落PCR,挑取阳性菌落37℃培养后提取GmFER84质粒(OMEGA质粒提取试剂盒),电泳检测阳性后,送往擎科基因公司测序,将得到的丹波黑大豆耐铝相关基因碱基序列与大豆基因组中序列比对,获得目的基因。同时,对GmHA4基因进行改造,使其表达出不带有C末端自抑区,改造后将其命名为ΔGmHA4。[0035] 2、载体构建[0036] (1)双基因组合载体的构建[0037] 插入基因表达盒(GEC):以载体pSuper1300‑eGFP为骨架,基因合成poly(A)‑NOS‑35SPPDK‑35S,利用设计的引物XbalI‑poly(A)和35S‑SalI,一步克隆插入到载体的MAS和eGFP之间,从而在RB端的MAS与LB端的eGFP之间形成了3个GEC:MAS‑poly(A)、NOS‑35SPPDK、35S‑eGFP‑NOS。[0038] F:5’‑CTCGATACACCAAATCGACTCTAGAGATCGTTCAAACATTTGGCA‑3’;[0039] R:5’‑TATTTAAATGTCGACCCCGGGGGAGCAAGGGGAGAGGGAG‑3’。[0040] 双基因组合35S::(GmM4‑ΔGmHA4)载体的构建:以改造后的载体为骨架,利用2个GEC:MAS‑poly(A)、NOS‑35SPPDK,设计引物XbalI‑GmM4‑XbalI、SmaI‑ΔGmHA4‑SmaI,一步克隆,构建为包含MAS、GmM4、poly(A)、NOS、ΔGmHA4、35SPPDK、35S、eGFP、NOS、35S、HygR、poly(A)等元件组成的过表达载体,构建好的载体命名为pSuper1300‑GmM4‑ΔGmHA4‑eGFP(图1)。[0041] XbalI‑GmM4‑XbalI‑F:5’‑ATACACCAAATCGACTCTAGAATGGACGAGAATAGAAGTTCC‑3’;[0042] XbalI‑GmM4‑XbalI‑R:5’‑AAATGTTTGAACGATCTCTAGACTAAGGCAGTGAGCGACCTCT‑3’;[0043] SmaI‑ΔGmHA4‑SmaI‑F:5’‑CTCTCCCCTTGCTCCCCCGGGATGGGCGGTATCAGCCTTGA‑3’;[0044] SmaI‑ΔGmHA4‑SmaI‑R:5’‑GTATTTAAATGTCGACCCCGGGTCAACTCAGGACGTAGCGGATT‑3’;[0045] (2)三基因组合载体的构建[0046] 以双基因组合载体pSuper1300‑GmM4‑ΔGmHA4‑eGFP为骨架,设计引物SalI‑MsCSX1‑SalI,一步克隆,构建为包含MAS、GmM4、poly(A)、NOS、ΔGmHA4、35SPPDK、35S、MsCSX1、eGFP、NOS、35S、HygR、poly(A)等元件组成的三基因组合35S::(GmM4‑ΔGmHA4‑MsCSX1)植物表达载体,并命名为pSuper1300‑GmM4‑ΔGmHA4‑MsCSX1‑eGFP(图2)。[0047] SalI‑MsCSX1‑SalI‑F:5’‑TGTTACTAGATCCCCGGGGTCGACTGAGACTTTTCAACAAAGGG‑3’;[0048] SalI‑MsCSX1‑SalI‑R:5’‑CCACTAGTATTTAAATGTCGACCATCCTAGATCCAGCAAGTCTC‑3’。[0049] 实施例2转化烟草与功能鉴定[0050] 1、双基因组合35S::(GmM4‑ΔGmHA4)转基因烟草的筛选及功能鉴定[0051] (1)35S::(GmM4‑ΔGmHA4)转基因烟草的筛选[0052] 通过农杆菌(A.tumefaciens)Gv3101介导的叶盘法(Weietal.,2020),将pCAMBIA1300‑35S‑GmM4‑ΔGmHA4‑mCherry转化烟草,LUYOR‑3415RG筛选阳性幼芽,继续培养至生根,荧光复检,每个基因选择荧光较强的4个株系,命名为OE‑1、OE‑2、OE‑3、OE‑4。RT‑qPCR结果显示,与WT相比,转基因烟草中GmM4、ΔGmHA4基因的相对表达水平均显著上调(P<0.05,图3)。[0053] (2)铝胁迫下35S::(GmM4‑ΔGmHA4)转基因烟草的表型分析[0054] 根尖细胞壁是铝毒的首要靶标(Lavhaleetal.,2018)。在50μmol/LAlCl3(pH4.5)条件下,35S::(GmM4‑ΔGmHA4)转基因烟草的根相对伸长率(RRE)是WT的1.39‑1.48倍(P<0.05,图4A),说明转基因烟草根系的生长抑制作用较WT得到了明显的缓解。[0055] (3)过表达双基因组合35S::(GmM4‑ΔGmHA4)烟草的功能分析[0056] 在50μmol/LAlCl3(pH4.5)条件下,35S::(GmM4‑ΔGmHA4)转基因烟草的根尖柠檬酸分泌量是WT的4.94‑5.97倍(P<0.05,图4B);根尖铝含量是野生型的0.706倍(P<0.05,图4C)。以上说明,铝胁迫下过表达35S::(GmM4‑ΔGmHA4)能显著提高根尖柠檬酸分泌量,从而提高转基因植株的耐铝性。[0057] (4)过表达双基因组合与单基因GmM4、ΔGmHA4转基因烟草的比较[0058] 50μmol/LAlCl3(pH4.5)条件下,双基因组合35S::(GmM4‑ΔGmHA4)与单个基因35S::GmM4、35S::ΔGmHA转基因烟草比较结果发现,转基因烟草的RRE分别是WT的1.39‑1.48、1.23‑1.37、1.15‑1.33倍(P<0.05,图4A,图5A,图6A),柠檬酸分泌量分别是WT的4.94‑5.94、3.39‑4.53、1.98‑3.10倍(P<0.05,图4B,图5B,图6B),而根尖铝含量分别是WT的0.706、0.735、0.884倍(P<0.05,图4C,图5C,图6C)。[0059] 三者耐铝性比较:双基因组合35S::(GmM4‑ΔGmHA4)>单个柠檬酸通道蛋白基因GmM4或者单个氢泵基因ΔGmHA4的转基因烟草,这可能与柠檬酸通道蛋白GmM4为柠檬酸分泌提供通道的同时,改造后的氢泵ΔGmHA4为柠檬酸分泌提供源源不断的动力(Briskinetal.,1990;Zhouetal.,2013)有关,验证了柠檬酸‑质子转运体系分子设计的可行性。[0060] 2、三基因组合35S::(GmM4‑ΔGmHA4‑MsCSX1)转基因烟草的筛选及功能鉴定[0061] (1)三基因组合表达载体的构建及烟草阳性植株的筛选[0062] 通过农杆菌Gv3101介导叶盘法(Weietal.,2020),将三基因组合载体35S::(GmM4‑ΔGmHA4‑MsCSX1)转化烟草,利用荧光筛选阳性幼芽,继续培养至生根,荧光复检,选择荧光较强的阳性植株,命名为OE‑1、OE‑2、OE‑3、OE‑4,用于耐铝功能验证。qRT‑PCR结果显示,转基因烟草根尖GmM4、ΔGmHA4、MsCSX1的相对表达水平与WT相比显著上调(P<0.05,图7)。[0063] (2)铝胁迫下过表达35S::(GmM4‑ΔGmHA4‑MsCSX1)烟草根的生长测定[0064] 在50μmol/LAlCl3(pH4.5)条件下,三基因组合35S::(GmM4‑ΔGmHA4‑MsCSX1)转基因烟草的根相对伸长率(RRE)是WT的1.42‑1.55倍(P<0.05,图8A),说明铝胁迫下35S::(GmM4‑ΔGmHA4‑MsCSX1)转基因烟草通过根系生长缓解了铝毒害。[0065] (3)35S::(GmM4‑ΔGmHA4‑MsCSX1)转基因烟草的功能分析[0066] 在50μmol/LAlCl3(pH4.5)条件下,三基因组合35S::(GmM4‑ΔGmHA4‑MsCSX1)转基因烟草的根尖柠檬酸分泌量是WT的10.81‑12.58倍(P<0.05,图8B),根尖铝含量是WT的0.586倍(P<0.05,图8C)。以上说明,铝胁迫下过表达三基因组合35S::(GmM4‑ΔGmHA4‑MsCSX1)能显著降低转基因烟草的根尖铝含量,提高根尖柠檬酸分泌量,从而提高转基因烟草的耐铝性。[0067] (4)转录因子GmFER84与双基因组合、三基因组合转基因烟草耐铝性的比较[0068] 铝胁迫下,双基因组合35S::(GmM4‑ΔGmHA4)、三基因组合35S::(GmM4‑ΔGmHA4‑MsCSX1)与转录因子(35S::GmFER84)转基因烟草的耐铝功能比较,结果显示50μmol/LAlCl3(pH4.5)条件下,35S::(GmM4‑ΔGmHA4)、35S::(GmM4‑ΔGmHA4‑MsCSX1)、35S::GmFER84转基因烟草的RRE分别是WT的1.39‑1.48、1.42‑1.55、1.27‑1.41倍(P<0.05,图4A,图8A,图9D),柠檬酸分泌量分别是WT的4.94‑5.94、10.42‑12.58、1.70‑1.79倍(P<0.05,图4B,图8B,图9A),而根尖铝含量分别是WT的0.706、0.586、0.74倍(P<0.05,图4C,图8C,图9B)。[0069] 实施例3[0070] 1、双基因组合M811::(GmM4‑ΔGmHA4)紫花苜蓿发根耐铝鉴定[0071] 正常条件下(0μmol/LAlCl3,pH4.5),与野生型相比,M811::(GmM4‑ΔGmHA4)转基因紫花苜蓿发根的根尖铝含量、可溶性蛋白、H2O2含量无显著差异(P>0.05,图10B、C、D)。[0072] 其中,M811启动子序列如下:[0073] CAAACTCATGACAATAGGAAGAACAATCTACAATATAGGAACAATATGACCTTATATAAATATTTTGTTTTGGTGTAACATTTTTCTTCCAATATGACCATTCACTTAACTACTTACTACAGTTTTATCGTTTCTTGCCAAAAAGTGAAAAGATGGCCATGTTAATGTCTATCTTGACTCTAGTATTCGAATAAAATTTATCTAAAAGTGAGTTGAACATAAAATTTGAGATTATATAGAATCAAAA。(SEQIDNO.4)[0074] 25μmol/LAlCl3(pH4.5)条件下,M811::(GmM4‑ΔGmHA4)转基因紫花苜蓿发根的根尖柠檬酸分泌量与野生型相比显著增加(P<0.05,图10A),可溶性蛋白有上升趋势(图10B);根尖铝含量和H2O2含量显著降低(P<0.05,图10C、D),根尖伊文思蓝染色明显变浅(图10E),表明M811::(GmM4‑ΔGmHA4)转基因紫花苜蓿根尖吸附的铝离子与野生型相比显著减少,铝胁迫下过表达M811::(GmM4‑ΔGmHA4)基因能显著降低根尖铝含量,提高根尖柠檬酸分泌量,从而提高紫花苜蓿的耐铝性。[0075] 与WT相比,25μmol/LAlCl3(pH4.5)条件下,M811::(GmM4‑ΔGmHA4)转基因紫花苜蓿根系的生长抑制作用得到了明显的缓解,根相对伸长率(RRE)是WT的1.28‑1.33倍(P<0.05,图10F)。[0076] 2、三基因组合M811::(GmM4‑ΔGmHA4‑MsCSX1)紫花苜蓿发根耐铝鉴定[0077] 正常条件下(0μmol/LAlCl3),与野生型相比,M811::(GmM4‑ΔGmHA4‑MsCSX1)紫花苜蓿发根的根尖铝含量、可溶性蛋白、H2O2含量无显著差异(P>0.05,图11B、C、D)。[0078] 25μmol/LAlCl3(pH4.5)条件下,与野生型相比,M811::(GmM4‑ΔGmHA4‑MsCSX1)转基因紫花苜蓿发根的根尖柠檬酸分泌量、可溶性蛋白显著增加(P<0.05,图11A、B),而根尖铝含量和H2O2含量显著降低(P<0.05,图11C、D),根尖伊文思蓝染色明显变浅(图11E),表明根尖吸附的铝离子明显减少,M811::(GmM4‑ΔGmHA4‑MsCSX1)基因能显著降低转基因紫花苜蓿的根尖铝含量,提高根尖柠檬酸分泌量,从而提高紫花苜蓿的耐铝性。[0079] 与野生型相比,25μmol/LAlCl3(pH4.5)条件下,M811::(GmM4‑ΔGmHA4‑MsCSX1)转基因紫花苜蓿发根的RRE是WT的1.31‑1.41倍(P<0.05,图11F),说明转基因紫花苜蓿根系的铝毒害受到了缓解。[0080] 以上结果表明,三基因组合转基因紫花苜蓿的耐铝性和柠檬酸分泌量显著增强,成为本研究创制出的紫花苜蓿耐铝新种质。[0081] 最后应说明的是,以上具体实施方式仅用以说明本发明的技术方案而非限制,尽管参照实例对本发明进行了详细说明,本领域的普通技术人员应当理解,可以对本发明的技术方案进行修改或者等同替换,而不脱离本发明技术方案的精神和范围,其均应涵盖在本发明的权利要求范围当中。
专利地区:四川
专利申请日期:2023-11-17
专利公开日期:2024-11-19
专利公告号:CN117660479B
以上信息来自国家知识产权局,如信息有误请联系我方更正!
该专利所有权非本平台所有,我方无法提供专利权所有者联系方式,请勿联系我方。




